自然保护区野生动物保护恢复需考虑传统功能分区与物种特异性的综合影响
长期以来,中国自然保护区功能分区采用国际“人与生物圈”计划生物保护区的基本模式,即“核心区-缓冲区-实验区”模式来平衡生物多样性保护与可持续发展。我国1994年颁布的《中华人民共和国自然保护区条例》对三区的主要任务与保护方式做了明确规定,从实验区到核心区对人类活动限制加强。根据2026年2月国务院修订的新《条例》,原有的“三区模式”被调整为"核心保护区"和"一般控制区"两区模式。在当下全国自然保护区分区模式调整和整合优化背景下,这种功能分区对野生动物的保护成效评估仍缺少实证研究,尤其是对于恢复型森林生态系统时空动态变化,其难点主要源于保护区内森林演替、人为干扰、功能群落和特定物种之间的复杂相互作用。
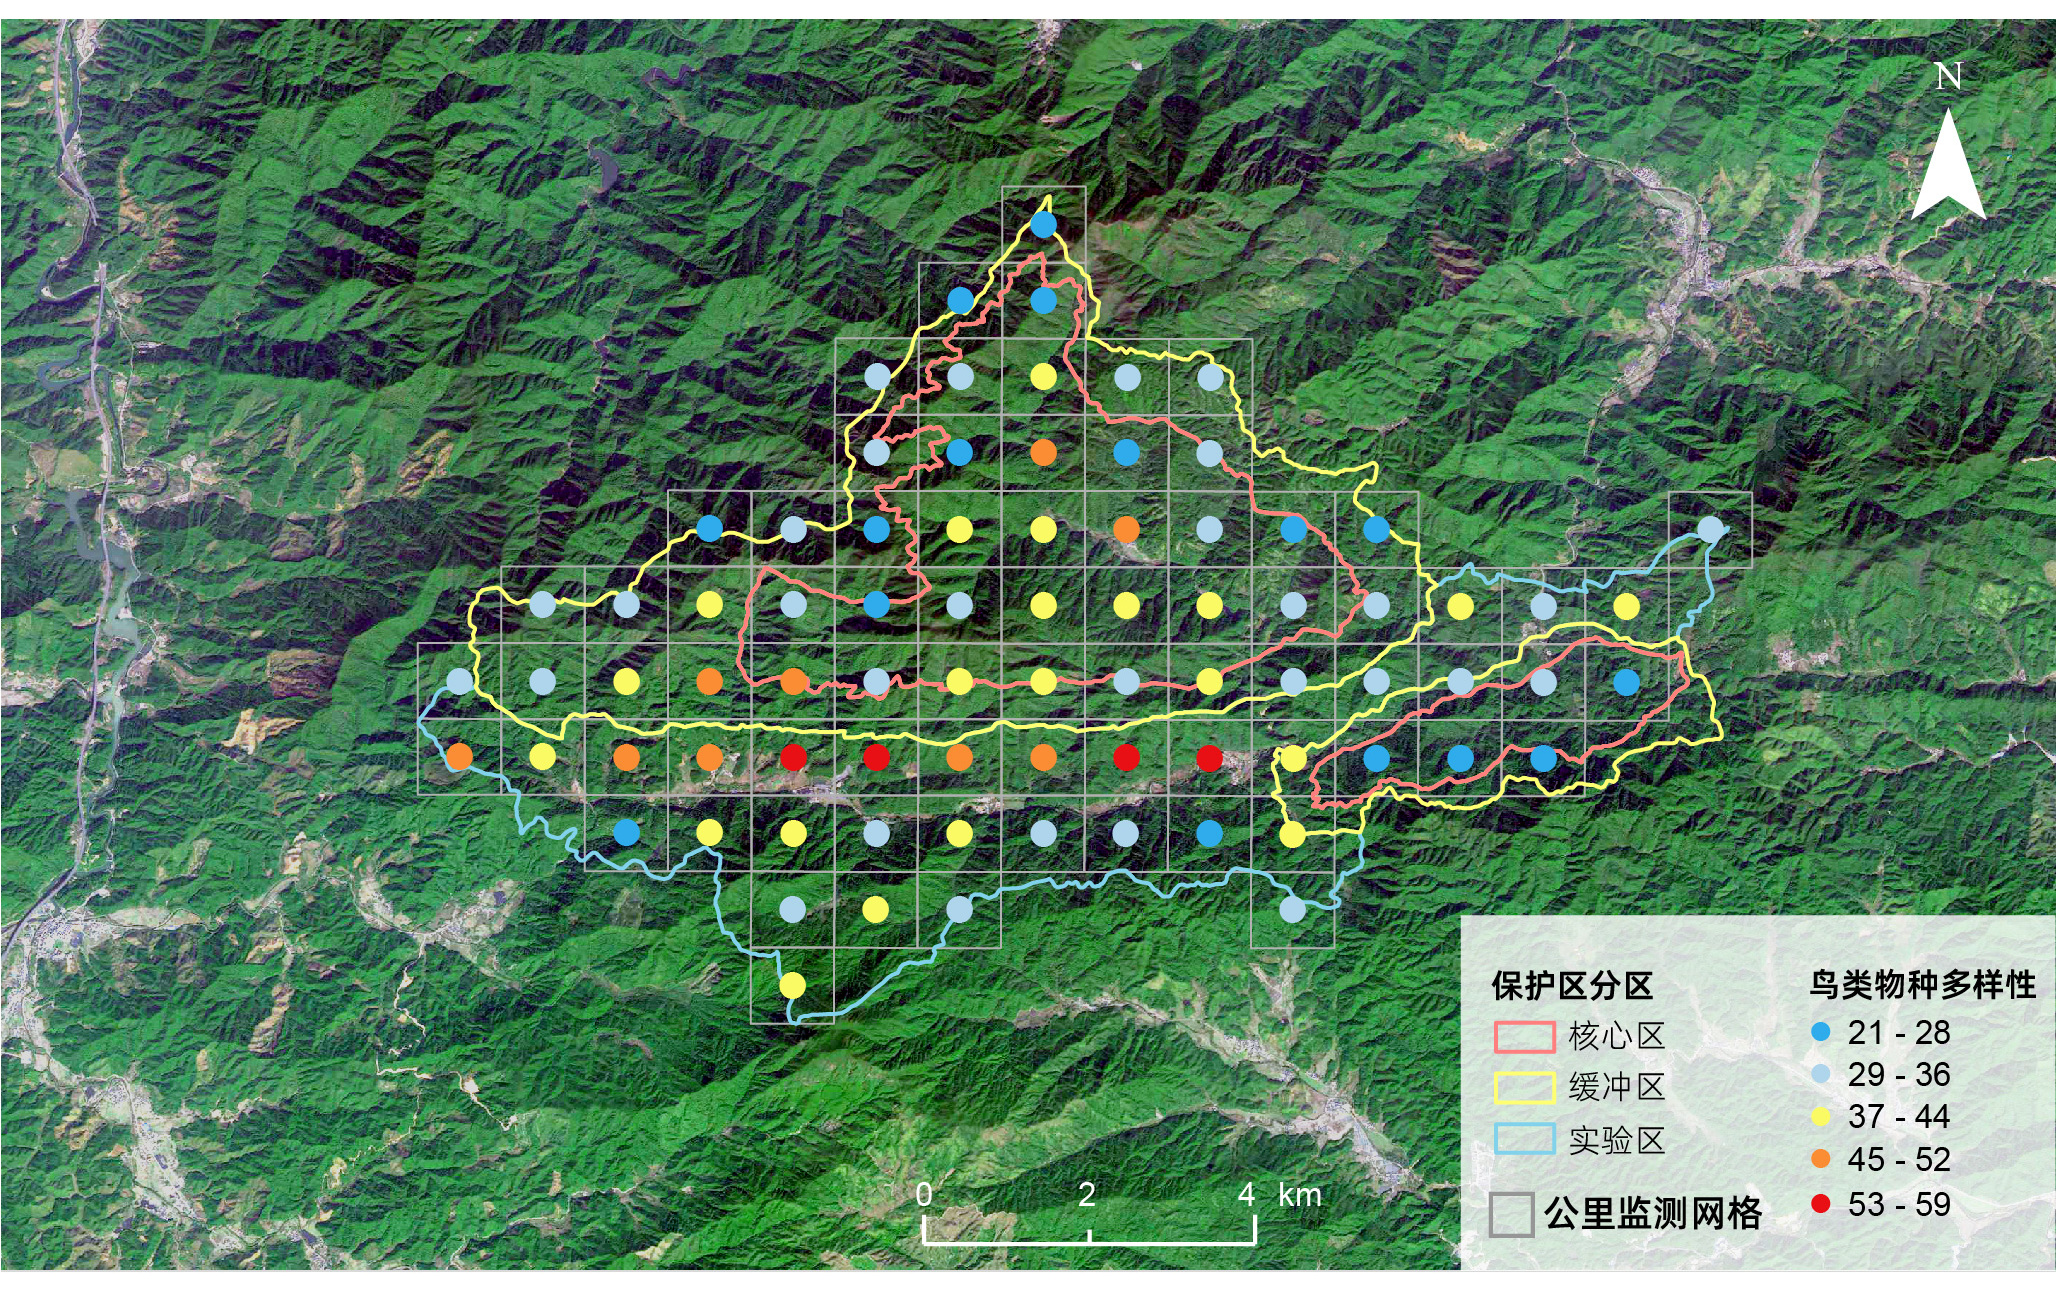
图1 广东车八岭国家级自然保护区鸟类全域网格化监测网络体系(灰色为1km×1km网格,彩色圆点为物种丰富度)
鉴于此,广东省科学院动物研究所岭南动物多样性创新中心和广东车八岭国家级自然保护区的科研技术人员,自2019年起建立了国内首个自然保护区鸟类全网格监测体系(图1)。在鸟类物种、功能群和群落三个层面,分析了保护区功能分区、人类干扰及景观环境因子如何共同塑造鸟类空间分布模式,并提出以下假说(图2):
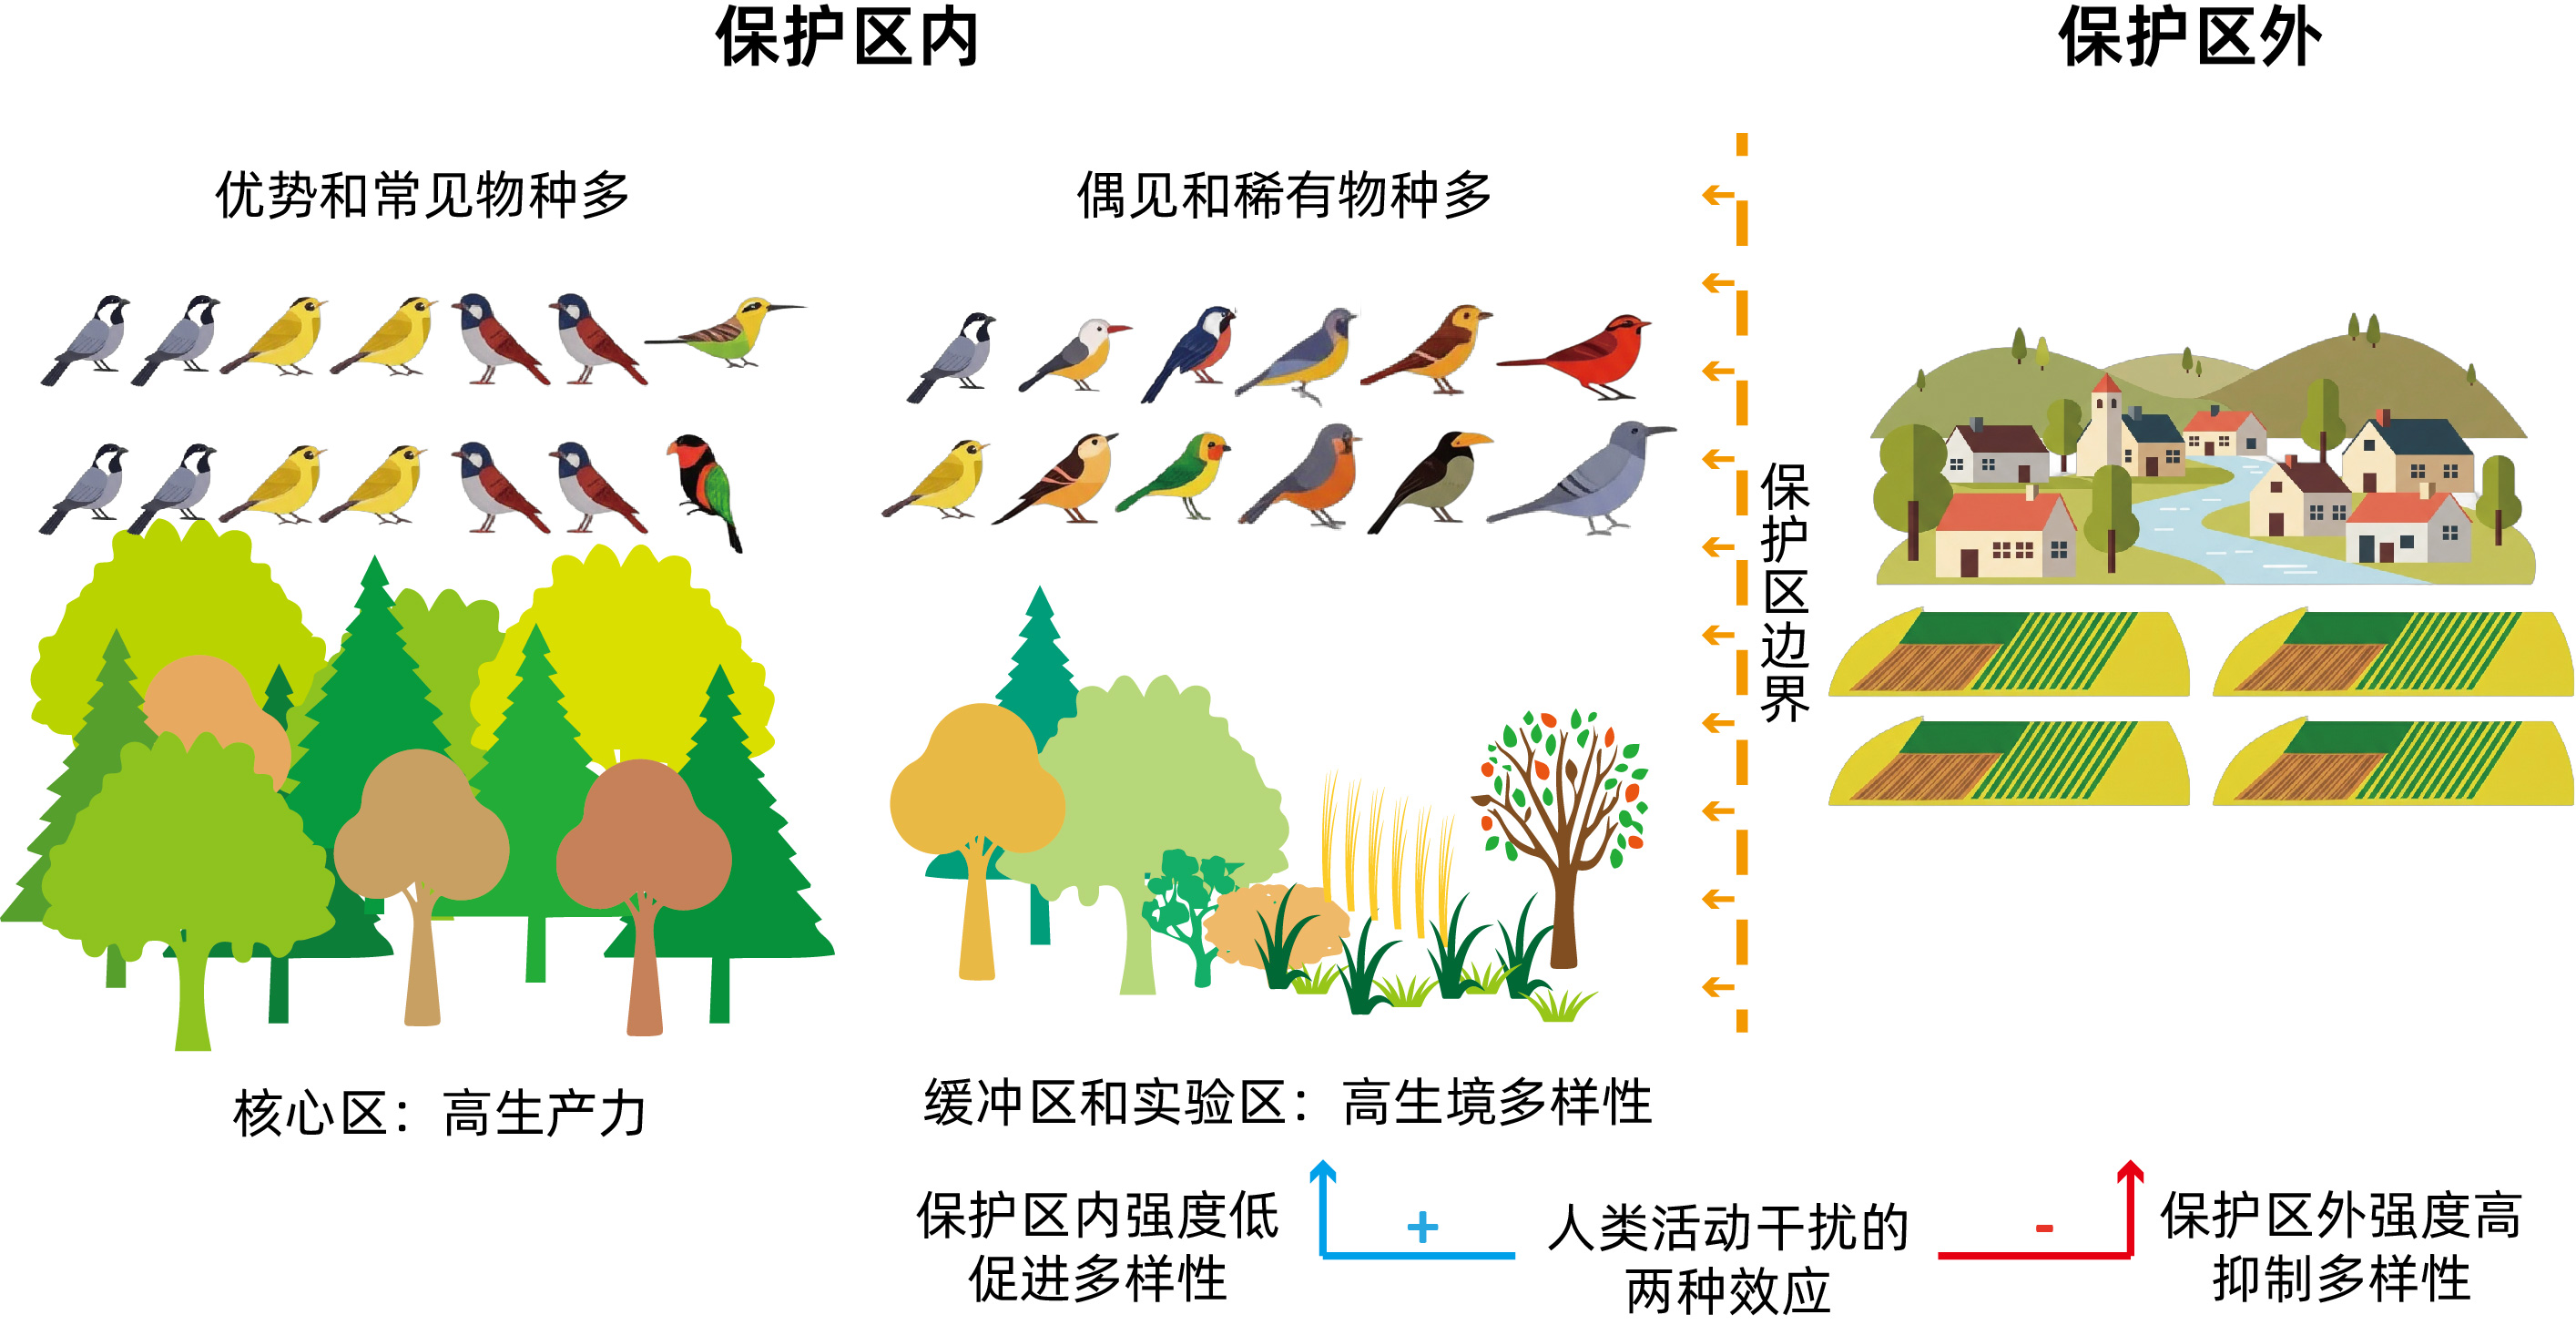
图2 研究框架假说示意图:恢复中的亚热带森林中鸟类多样性热点并不与保护区功能分区相一致,而是出现在具有低强度人类活动的实验区。这种错位源于不同鸟类类群的相反响应,数量较多的核心种主要受植被生产力支持,而许多低频出现的物种则受到人类村落附近生境异质性的吸引。大多数鸟类会回避保护区边界区域。
80个网格单元的鸟类监测数据表明,19种核心种占总个体数的78.2%,而多达110种偶见种占总个体数的5.4%。空间分布上,鸟类多样性热点与保护区功能分区并不一致,实验区在物种丰富度和个体数上均显著高于核心区。结构方程模型很好解释了上述格局的驱动机制(图3):核心种的丰富度依赖个体数量,而个体数量受植被生产力正影响,表明核心种主要依赖长期稳定且生产力较高的森林环境。与此不同,偶见种的分布与人类村落距离、植被结构和地形因子的关联较强,反映出其对多样化微生境和资源斑块的利用。
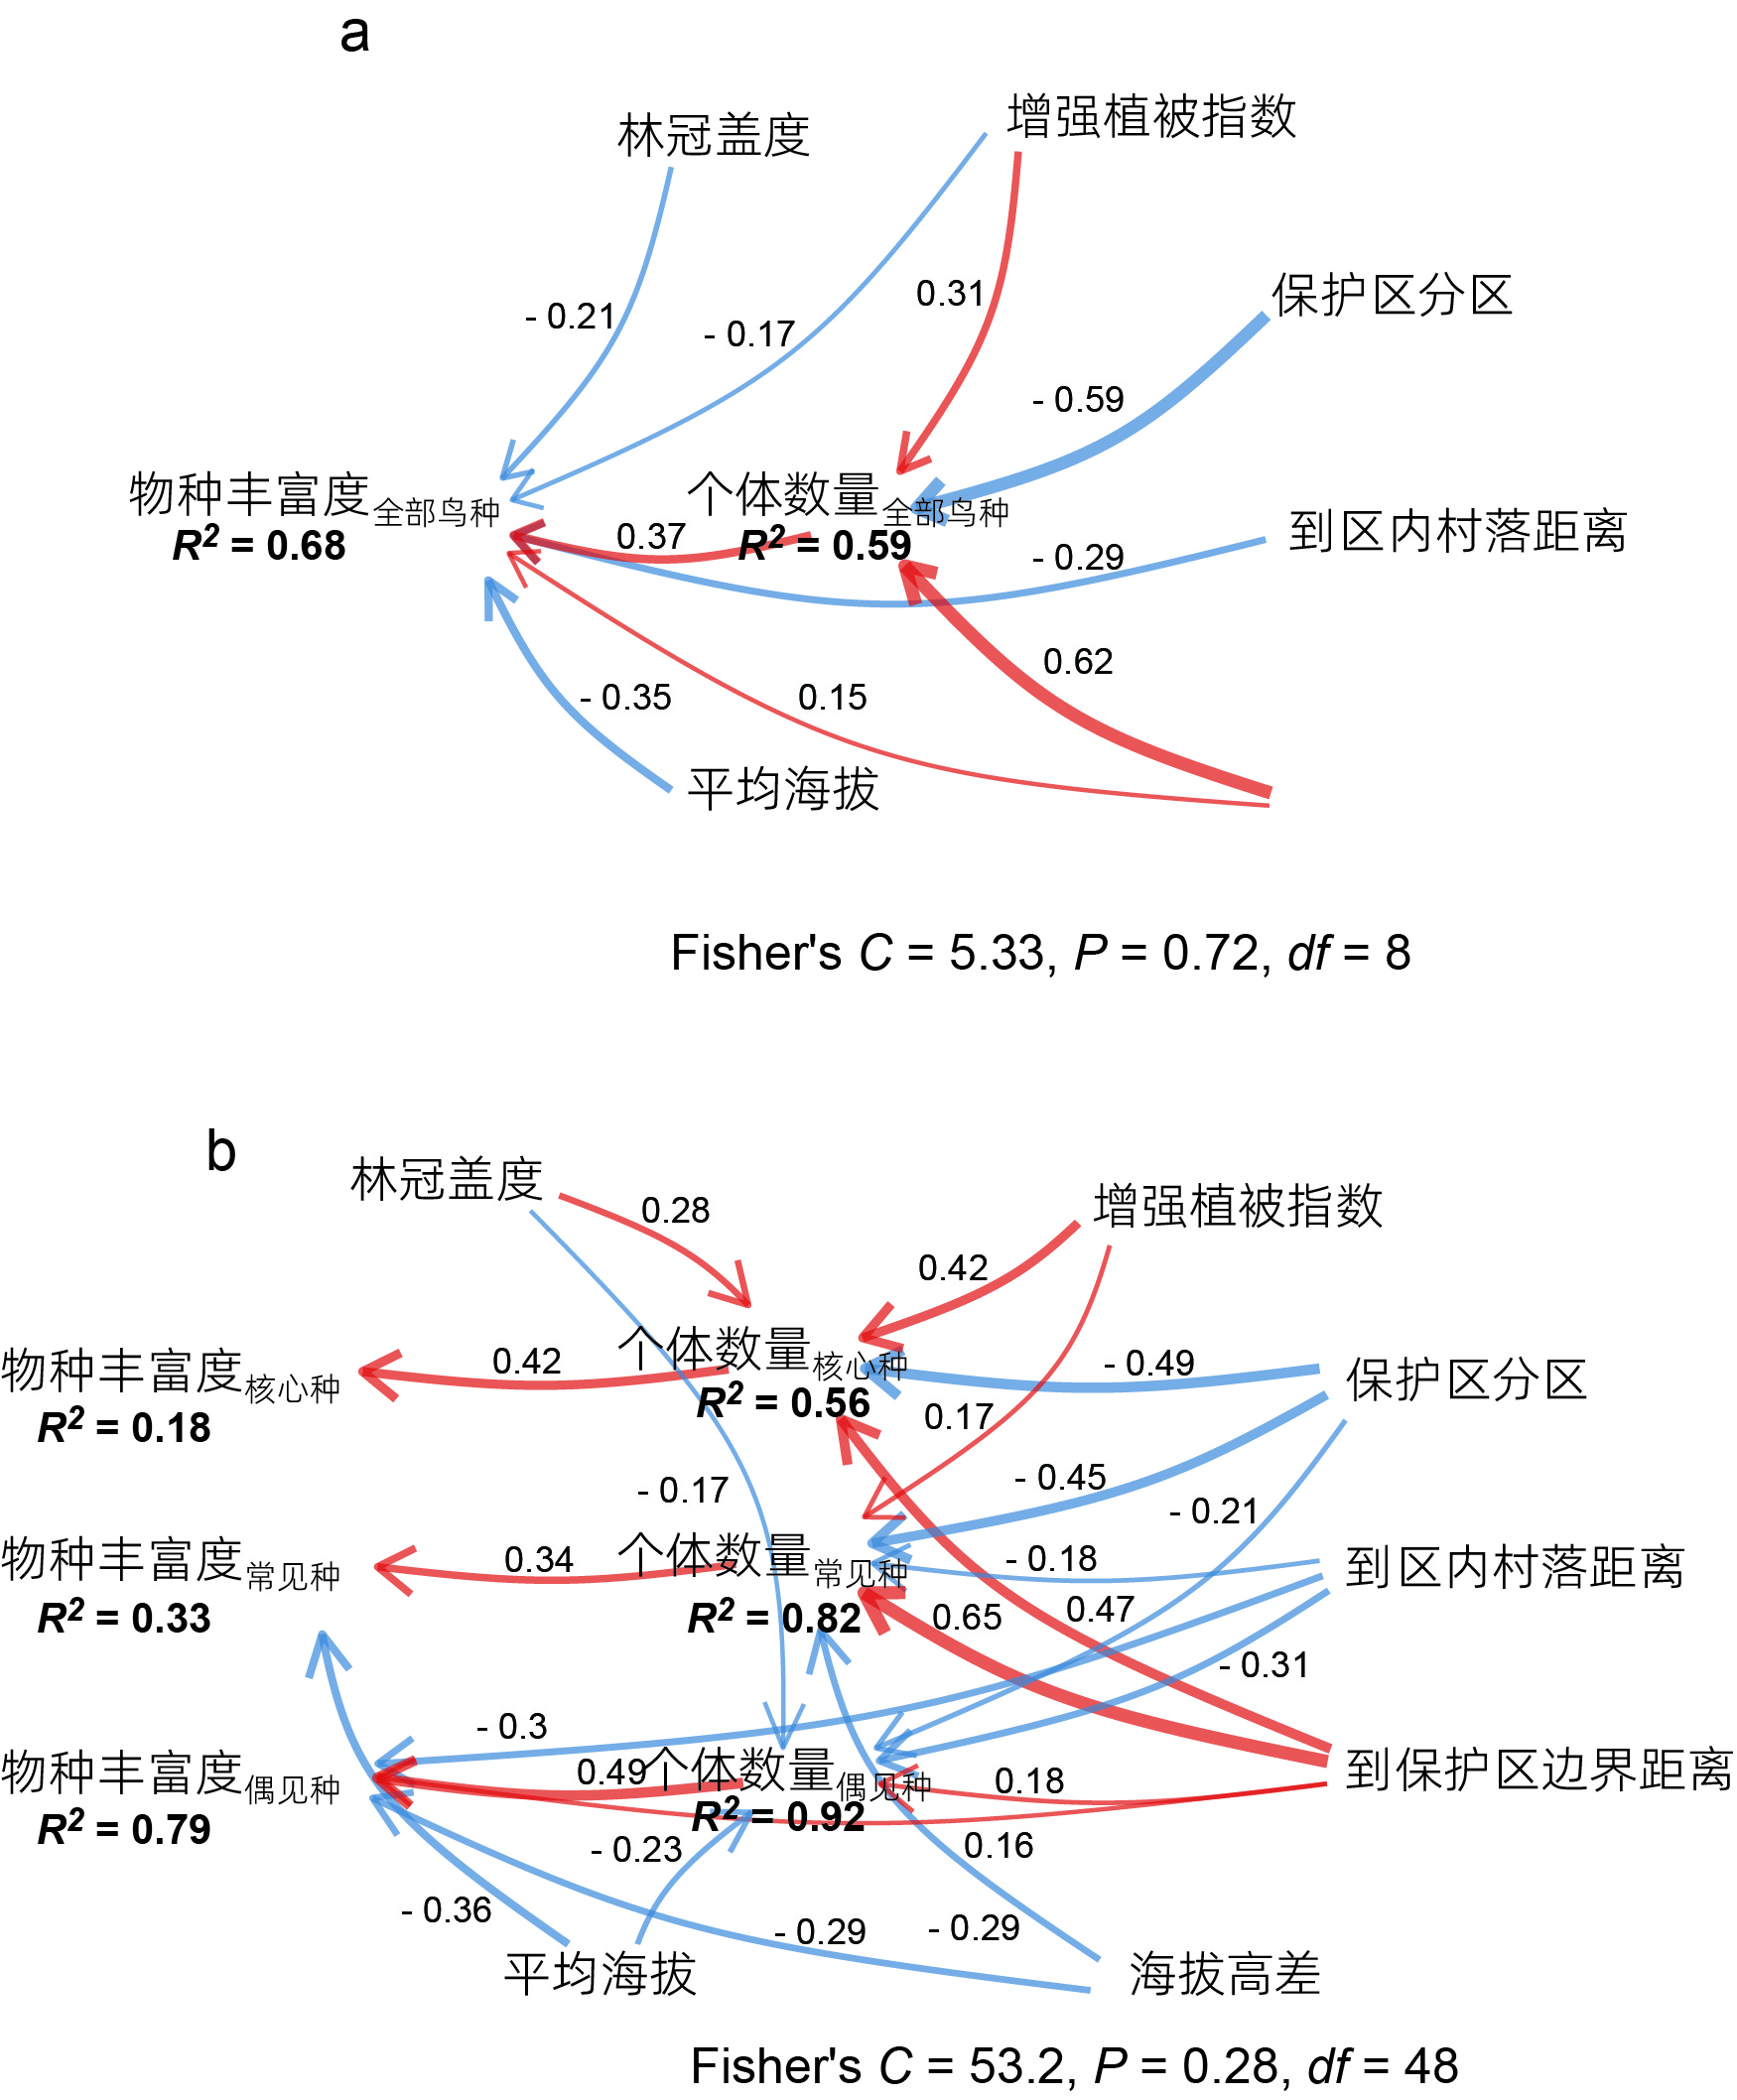
图3 总体鸟类群落(a)和核心种、常见种和偶见种(b)中鸟类物种丰富度与个体数量的驱动因素。实线箭头表示显著的直接作用路径(P<0.05)。红色箭头表示正的标准化路径系数,蓝色箭头表示负的系数,箭头粗细表示标准化系数的大小。
物种水平和功能群的冗余排序分析进一步表明,鸟类组成沿植被完整性、保护分区和人类村落距离梯度发生了明显分化,具体表现在(图4):对于森林依赖性较强、干扰响应敏感的鸟类(如白鹇、灰树鹊、栗背短脚鹎、淡眉雀鹛等),更倾向于分布在远离人类村落、靠近核心区、森林结构较完整的区域,显示核心区对于重点保护物种和森林专性鸟类仍具有不可替代的作用。而保护区村落低强度的小规模农林复合经营等干扰因素,为偶见种(如蓝矶鸫、红喉歌鸲等)、低森林依赖性及部分开阔地鸟类(如白头鹎、家燕等、树鹨、白腰文鸟、珠颈斑鸠等)提供林窗、果树、灌丛、农地和林缘等多样化微生境以及更多的食物资源。
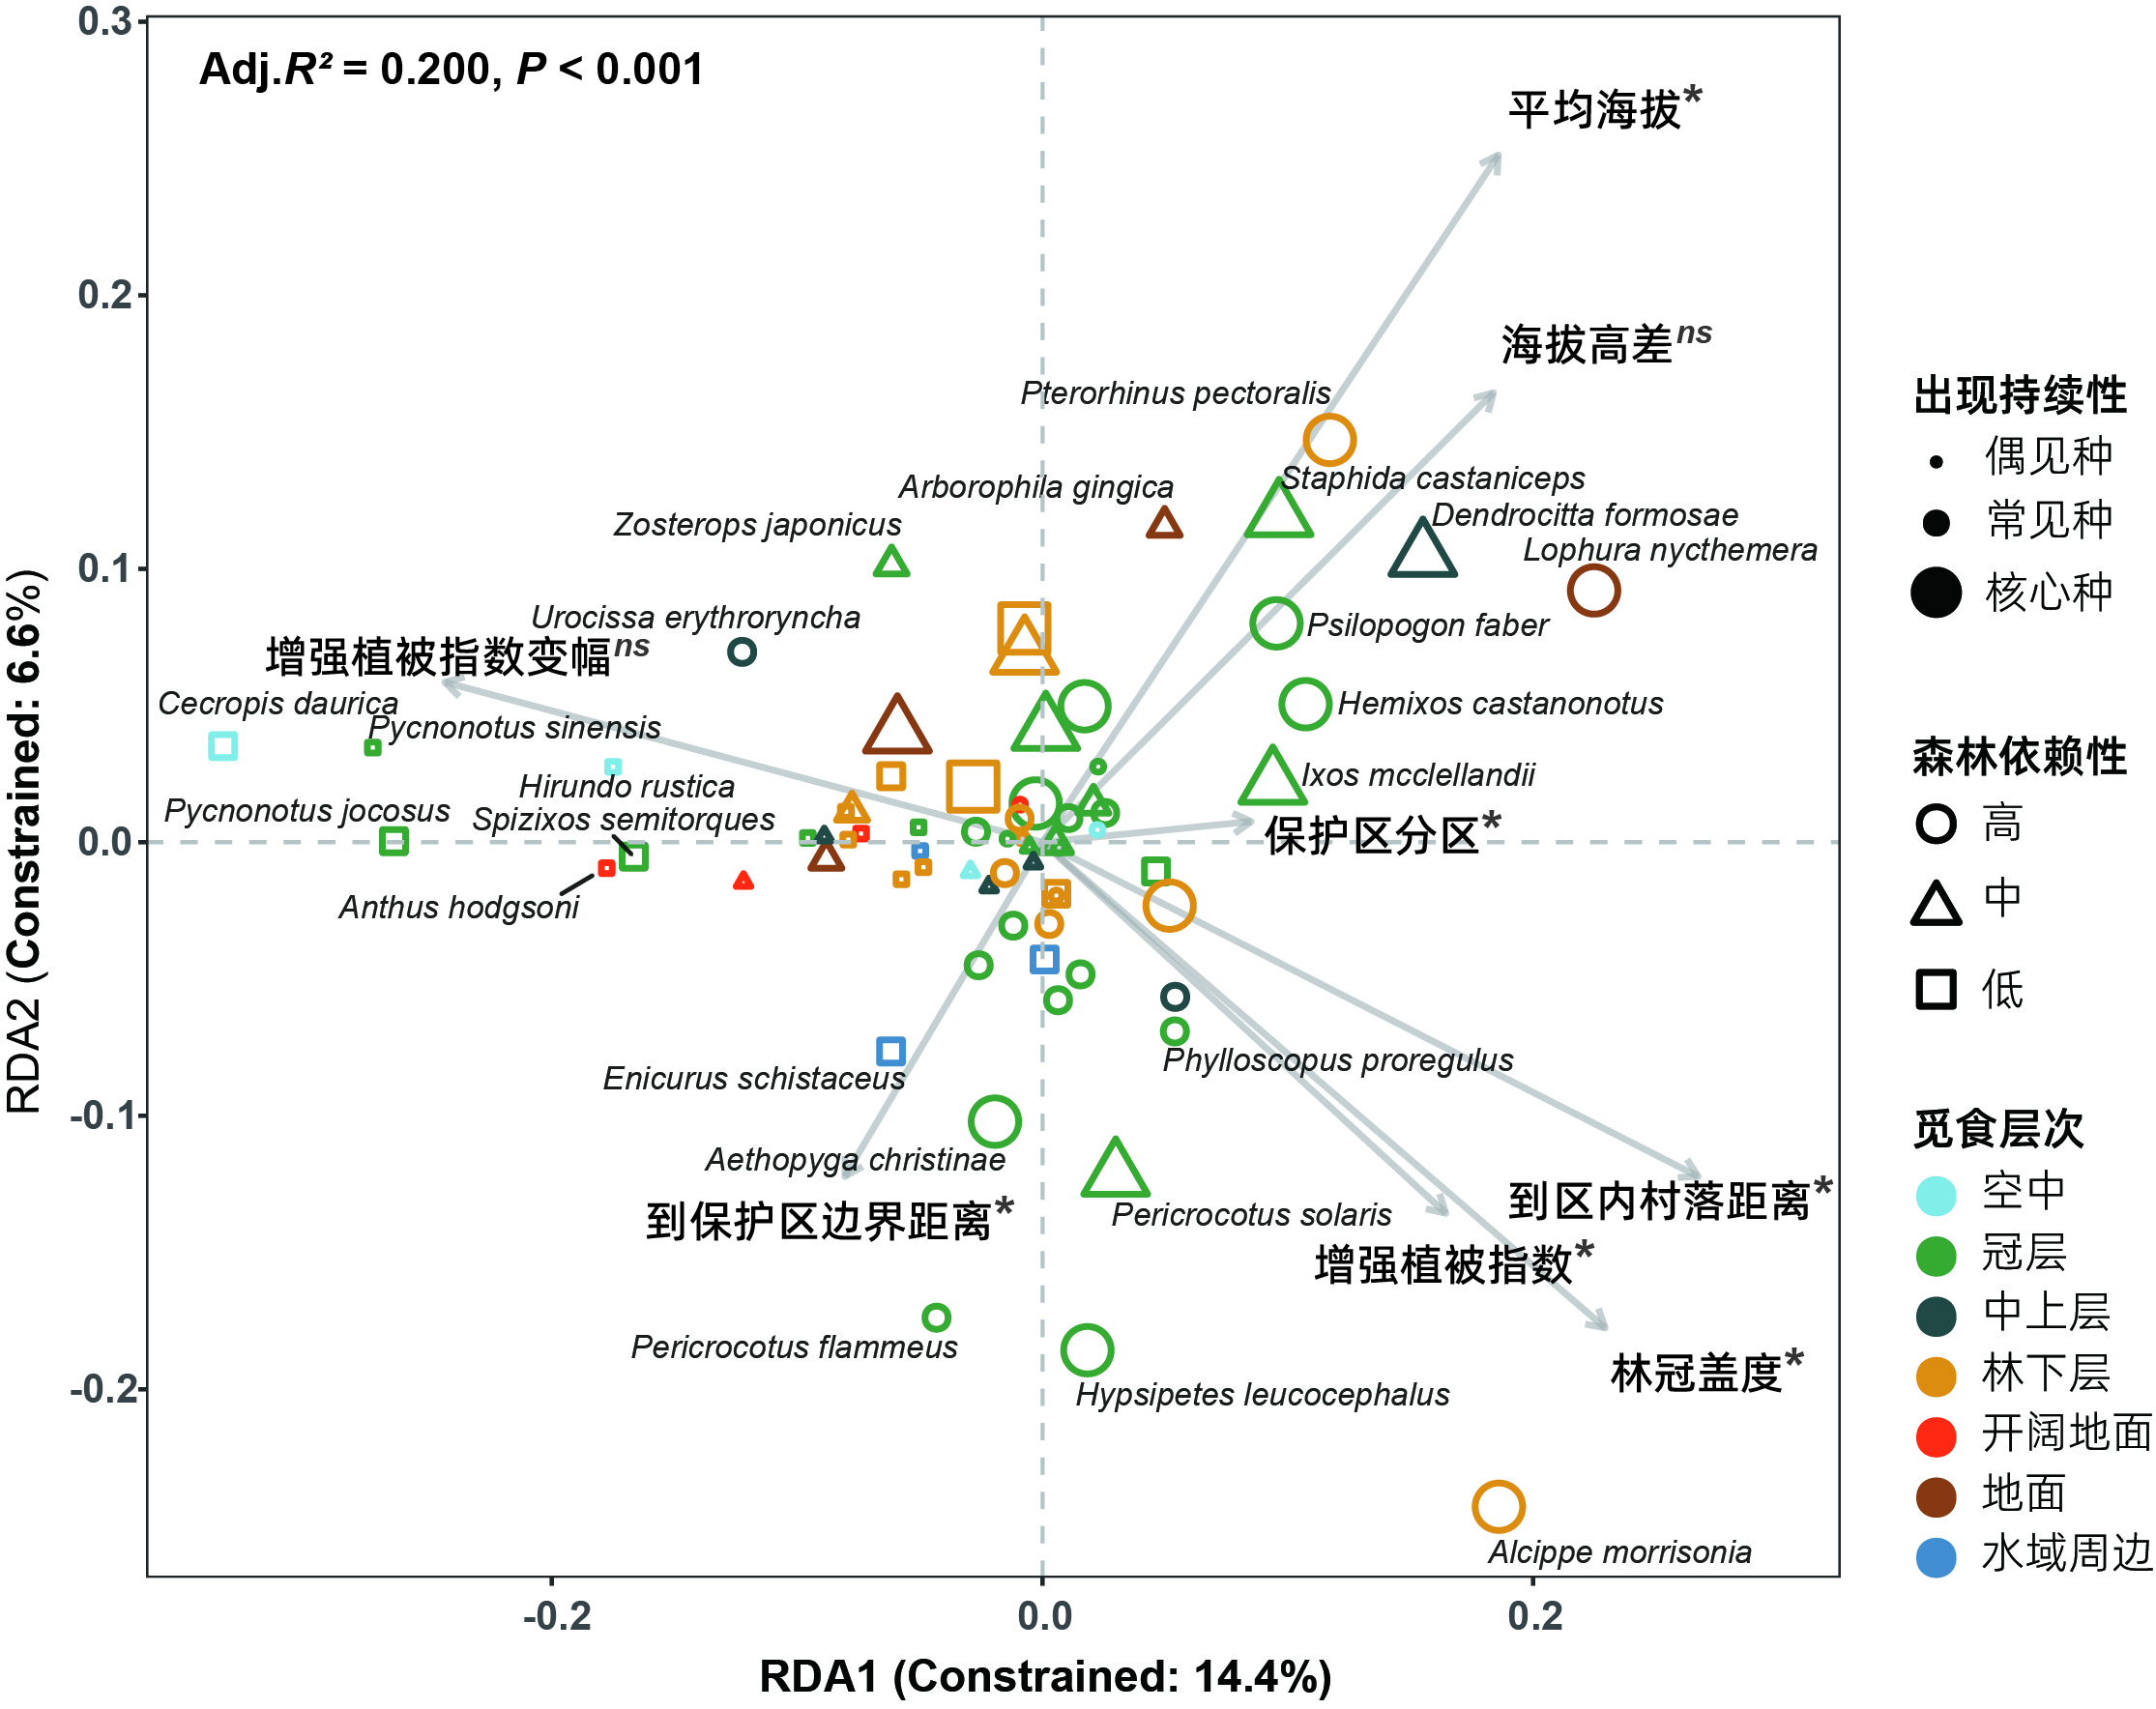
图4 受环境变量约束鸟类群落组成的冗余分析排序:物种点大小表示核心种(大)、常见种(中)和偶见种(小),形状表示其森林依赖程度的高(圆形)、中(三角形)、低(方形),颜色表示其觅食层次。灰色箭头表示环境变量向量;标有“*”的向量表示影响显著(P < 0.05),“ns”表示不显著。
这一研究提示我们,过去30年间我国自然保护区的静态功能分区对于动物多样性热点区域的保护仍存在改进空间。部分实验区因小规模人为干扰形成生境异质性驱动,偶见种和广适种丰富度更高;严格保护的核心区虽不一定拥有最多物种数,却维持了森林专性种和干扰敏感种的关键种群数量。因此,保护区管理成效不宜采用单一指标,而应结合功能类群和物种组成变化进行综合评估。在我国自然保护地整合优化和精细化管理背景下,该研究为南方山地森林恢复型自然保护区的适应性管理提供了实证依据。未来保护区管理需要在维持核心区严格保护的同时,关注实验区或一般控制区中生境异质性的合理保留,并通过周边景观治理缓解外部边缘压力。对于许多由历史采伐、人工林或次生林恢复而来的保护区而言,如何在森林恢复过程中同时提升结构复杂性、保护敏感物种并维持整体群落多样性,将是自然保护地管理面临的重要课题。
研究成果以“Productivity and Human Disturbance Shape Contrasting Distribution Patterns of Core and Occasional Bird Species in a Subtropical Forest Reserve in Southern China”为题,发表于国际动物学会会刊Integrative Zoology。广东省科学院动物研究所权擎博士为第一作者,张强研究员为通讯作者。研究得到国家重点研发计划、国家自然科学基金、广东省林业科技创新和车八岭生态监测能力提升等项目资助。
(供稿:岭南生物多样性创新中心 权擎)